


成纤维细胞胶原蛋白合成减少是皮肤衰老的关键环节。聚L‑乳酸(PLLA)是一种可生物吸收材料,能够持续释放乳酸,刺激皮肤内源性胶原蛋白的合成。本研究旨在探讨PLLA释放的乳酸对成纤维细胞胶原蛋白生成及皮肤再生的影响。体外实验中,人源成纤维细胞被不同浓度的PLLA处理;体内实验中,将PLLA注射至老年小鼠背部皮肤。通过Calcein‑AM/PI染色评估细胞活性,EdU增殖实验检测细胞增殖情况,并采用Western blot和免疫荧光分析成纤维细胞中I型及III型胶原蛋白的表达,以评价PLLA在胶原合成与皮肤再生方面的安全性和有效性。为阐明其作用机制,本研究还测定了PLLA处理组成纤维细胞的无细胞上清和细胞裂解液中的乳酸含量,以及全赖氨酸乳酸化(Pan‑Kla)水平。进一步发现,成纤维细胞可通过单羧酸转运蛋白‑1(MCT1)摄取PLLA释放的细胞外乳酸,并在KAT8依赖机制下促进潜在转化生长因子β结合蛋白1(LTBP1)第752位赖氨酸(K752)的乳酸化修饰,从而提高成纤维细胞中I型和III型胶原蛋白的蛋白水平。综上,本研究揭示了非组蛋白蛋白质乳酸化修饰在皮肤再生中的重要作用,为相关机制研究和应用提供了新视角。
关键词:
PLLA;乳酸化;成纤维细胞
皮肤衰老是一个自然过程,其特征是胶原蛋白水平的逐渐下降[1]。成纤维细胞是真皮的关键组成,通过合成I型胶原蛋白、III型胶原蛋白和弹性蛋白,为皮肤提供强度和弹性[1]。影响胶原蛋白流失的因素既包括内在的衰老过程,也包括受生活方式和环境暴露影响的外部因素[2]。随着年龄增长或紫外线照射,皮肤中成纤维细胞的胶原蛋白生成减少,导致对皮肤结构的支撑不足和真皮层变薄。
聚 L‑乳酸(PLLA)是一种常用于皮肤再生的注射材料,以其在体内的安全性和可降解性著称,最终通过水解代谢为乳酸和水[3]。先前研究表明,PLLA能提高 IL‑4 和 IL‑13 水平,促进抗炎性巨噬细胞极化,并通过 TGF‑β–PI3K–AKT 信号通路增强成纤维细胞的胶原蛋白合成,从而有效提升衰老皮肤中的胶原水平[4]。然而,作为 PLLA 关键成分的乳酸如何在分子水平上实现皮肤再生的具体机制仍不清楚。
传统上,乳酸被视为无氧条件下的代谢产物[5],但近来研究发现乳酸可通过赖氨酸乳酸化(Kla)调节巨噬细胞的代谢[6]。此外,越来越多的证据表明,乳酸可以修饰组蛋白或非组蛋白,影响免疫反应、炎症和组织再生。例如,有研究显示,乳酸通过激活 PKM2 促进巨噬细胞由炎症性 M1 状态向促修复的 M2 状态转变,从而改善皮肤创伤愈合;该过程涉及乳酸诱导 PKM2 第 62 位赖氨酸的乳酸化,增强其丙酮酸激酶活性以抑制 M1 巨噬细胞的糖酵解[7]。因此,我们推测,PLLA 释放的乳酸可能通过乳酸化修饰影响成纤维细胞的胶原合成。乳酸穿梭依赖于单羧酸转运蛋白(MCTs),这是一类负责转运乳酸、丙酮酸和酮体的细胞膜通道。在这些转运蛋白中,MCT1 在细胞内乳酸穿梭中发挥关键作用。多项研究已将 MCT1 与代谢、免疫反应和肿瘤发生等过程联系起来,提示其参与乳酸穿梭[8,9]。因此,PLLA 来源的乳酸可能也依赖 MCT1 进行细胞摄取。潜在转化生长因子 β 结合蛋白 1(LTBP1)与 TGF‑β 功能密切相关,是其关键组分,在皮肤弹性中发挥重要作用[10]。然而,目前尚不清楚 LTBP1 是否参与 PLLA 诱导的成纤维细胞胶原合成。
在本研究中,我们揭示了由 PLLA 释放的乳酸可显著提高成纤维细胞中 I 型和 III 型胶原蛋白水平,这对皮肤再生至关重要。有趣的是,研究发现乳酸通过 MCT1 进入成纤维细胞,并上调组蛋白乙酰转移酶 KAT8 的表达,从而促进 LTBP1 第 752 位赖氨酸的乳酸化修饰。这些新发现有助于我们在分子水平上理解乳酸如何影响皮肤再生,并可能为以乳酸为靶点、增强成纤维细胞胶原合成以对抗皮肤衰老的策略提供理论依据。
人包皮成纤维细胞(BJ,购自ATCC)在高糖DMEM培养基(货号11965118,Gibco,美国)中培养,培养基中另补充10%胎牛血清(货号FSP500,ExCell Bio,中国)、100 U/ml青霉素和100 μg/ml链霉素(货号15140122,Invitrogen,美国)。将BJ细胞分别以不同浓度的PLLA(终浓度0、0.25、0.5、1、5、25及50 mg/ml,溶于培养基中)处理24 h、48 h或72 h。
购自Cyagen(苏州,中国)的雄性C57BL/6小鼠(12月龄)用于体内实验。PLLA溶解于无菌生理盐水中,配制成50 mg/ml的注射液。实验小鼠随机分为生理盐水对照组和PLLA处理组。给药前,采用180 mg/kg三溴乙醇(货号T48402,Sigma Aldrich,美国)进行麻醉,并剃除背部毛发。每只小鼠背部真皮层于六个注射点处等分注射100 μl相应溶液,对照组注射等体积生理盐水。注射后第4天(4 d)和第28天(28 d),在呼吸麻醉下将小鼠安乐死,采集背部皮肤组织样本,用于后续实验。
采用Calcein‑AM/PI双重染色法评估存活及死亡细胞。将细胞置于37 °C下,用0.4 μM 荧光绿色Calcein‑AM(货号BB‑4126,BestBio,中国)染色30 min,用于检测存活细胞(绿色);随后用2 μM荧光红色PI(货号BB‑4126,BestBio,中国)染色5 min,用于检测死亡细胞(红色)。染色结束后,于荧光显微镜(Zeiss,德国)下观察,并在400 μm × 400 μm视野内计数细胞数量。
细胞活力采用细胞计数试剂盒‑8(CCK8,货号C0037,Beyotime,中国)评估。将BJ细胞按3000 个/孔接种于96孔板,进行相应处理后,每孔加入10 μl CCK8试剂,置于37 °C、5 % CO₂暗处孵育2 h,然后使用酶标仪(货号Synergy HTX,BioTek,美国)测定各孔的吸光度。所有实验均设三组重复。细胞增殖通过EdU检测(Cell‑Light Apollo567试剂盒,货号C10310‑1,RiboBio,中国)进行评估。简要流程如下:将BJ细胞按1 × 10⁴ 个/孔接种于6孔板,处理不同浓度的PLLA;孵育4 h后加入EdU,继续孵育;随后以4 %多聚甲醛(货号P885233,MACKLIN,中国)室温固定2 h,染DAPI显示细胞核;用荧光显微镜拍照,并统计EdU阳性细胞所占比例。
PLLA处理BJ细胞72 h后,收集细胞培养上清用于胞外乳酸检测。将上清液用乳酸检测试剂缓冲液(货号 BL868A,Biosharp,中国)适当稀释,加入反应混合液后于37°C孵育1 h,随后在450 nm处测定吸光度以获得胞外乳酸浓度。胞内乳酸含量检测时,先用冰冷PBS洗涤细胞两次,再加入100 μl检测试剂缓冲液充分裂解细胞,4°C 10000 g离心5 min,收集上清液,按试剂盒说明并依据标准曲线计算胞内乳酸浓度。
细胞内乳酸使用超灵敏乳酸传感器FiLa进行可视化。FiLa和FiLa‑C质粒由赵玉政教授提供。病毒包装时,将FiLa‑C和FiLa质粒与psPAX2包装质粒及Pmd2.G包膜质粒用Lipofectamine 3000(货号 L3000015,Invitrogen,美国)共转染HEK293T细胞。72 h后收集病毒上清,超速离心浓缩纯化后用于BJ细胞转染。BJ细胞乳酸可视化实验中,将细胞接种于35 mm玻璃底培养皿中,将病毒上清与培养基按1∶1比例混合后加入培养皿。3–4 d后,使用荧光显微镜观察细胞内绿色荧光。随后用嘌呤霉素处理48 h,之后更换为常规培养基。成像采用Zeiss共聚焦激光扫描显微镜,使用405 nm和488 nm激发激光,以500–550 nm发射波段进行双激发比值成像。
Total RNA采用Trizol法提取,cDNA使用qPCR RT Kit(货号 FSQ‑101,Toyobo,日本)合成,实时定量PCR则采用SYBR green试剂(货号 FP205,TIANGEN,北京,中国)进行。PCR反应的退火温度设定为55°C。各基因相对表达量以β‑actin为内参,采用2-ΔΔCt法计算。所用引物序列见表S1。
在人体成纤维细胞中使用特异性siRNA沉默MCT1、MMP1、LTBP1和KAT8(TsingkeBiotechnology,中国),序列见表S2。为预测LTBP1蛋白的潜在乳酸化位点,使用http://csspalm.biocuckoo.org/在线工具;同时从UniProt(https://www.uniprot.org/)获取人、小鼠、大鼠LTBP1蛋白序列,比较赖氨酸位点的物种保守性。通过PCR扩增Flag‑LTBP1 DNA片段并测序验证,将Flag‑LTBP1或其突变体[Flag‑K752R](将赖氨酸[K]突变为精氨酸[R])分别克隆至含EcoRI和XhoI位点的pcDNA3.1载体。所有质粒使用Endofree Plasmid Kit(货号 P1002,Magen,中国)纯化,并用Lipofectamine 3000(货号 L3000015,Invitrogen,美国)转染细胞。
采用Trizol提取总RNA;用Illumina TruSeq RNA样本制备试剂盒构建mRNA文库,并在BGI(中国)的DNBSEQ‑T7平台上进行测序。差异表达基因(DEGs)的筛选标准为假发现率(FDR)<0.01,fold change < 0.5或 > 2.0,P值 < 0.05。CUT&Tag实验采用Ruoyu Biotech的CUT&Tag Assay Kit(货号 CUT‑02,Ruoyu Biotech,中国),按说明书操作。简要流程如下:将BJ细胞以1 × 10⁵ 个/孔接种于6孔板中,加入PLLA(0.5 mg/ml)处理72 h;细胞于室温(RT)与ConA磁珠及Pan Kla抗体(1∶100)孵育2 h;洗涤后再于室温(RT)与抗兔二抗孵育1 h;随后加入pA‑Tn5转座酶获得靶向DNA片段,并使用接头引物进行PCR扩增;将PCR产物用DNA磁珠(货号 DB‑01,Ruoyu Biotech,中国)纯化后进行文库构建与测序(PERSONALBIO TECHNOLOGY CO., LTD,中国)。所用文库构建引物序列见表 S3。
细胞裂解液在含蛋白酶抑制剂混合物(货号 HY-K0010,MCE,美国)的裂解缓冲液中制备。IP实验中,使用Flag磁珠(货号 M8823,Millipore,美国)富集过表达的Flag-LTBP1,或使用抗LTBP1兔抗体富集内源性LTBP1。4°C孵育6 h后,洗涤沉淀3次,重悬于1×蛋白上样缓冲液。采用SDS-PAGE分离蛋白。本研究所用一抗和二抗详见表 S4。
皮肤样本先用4% PFA固定,30% 蔗糖脱水过夜,OCT包埋后进行冷冻切片。切片经透化和封闭后,4°C孵育一抗(见表 S4)过夜,室温孵育二抗2 h。
皮肤切片用PBS冲洗3次,Mayer氏苏木素染色5 min;置于70% 酒精中含0.5% 盐酸中分化5 s,用自来水冲洗30 s,两次蒸馏水冲洗;酸性泊尼胺红染色5 min,蒸馏水冲洗3次;1% 磷钼酸溶液孵育5 min,1% 苯胺蓝染色5 min,1% 冰醋酸溶液复染5 min;脱水、透明后胶原纤维呈蓝色;使用Image J软件分析染色强度。
数据以均数 ± SEM表示;两组比较采用双侧无配对t检验,多组比较采用单因素方差分析(ANOVA)后经Tukey多重比较检验,统计分析软件为Origin;P < 0.05为差异有统计学意义。
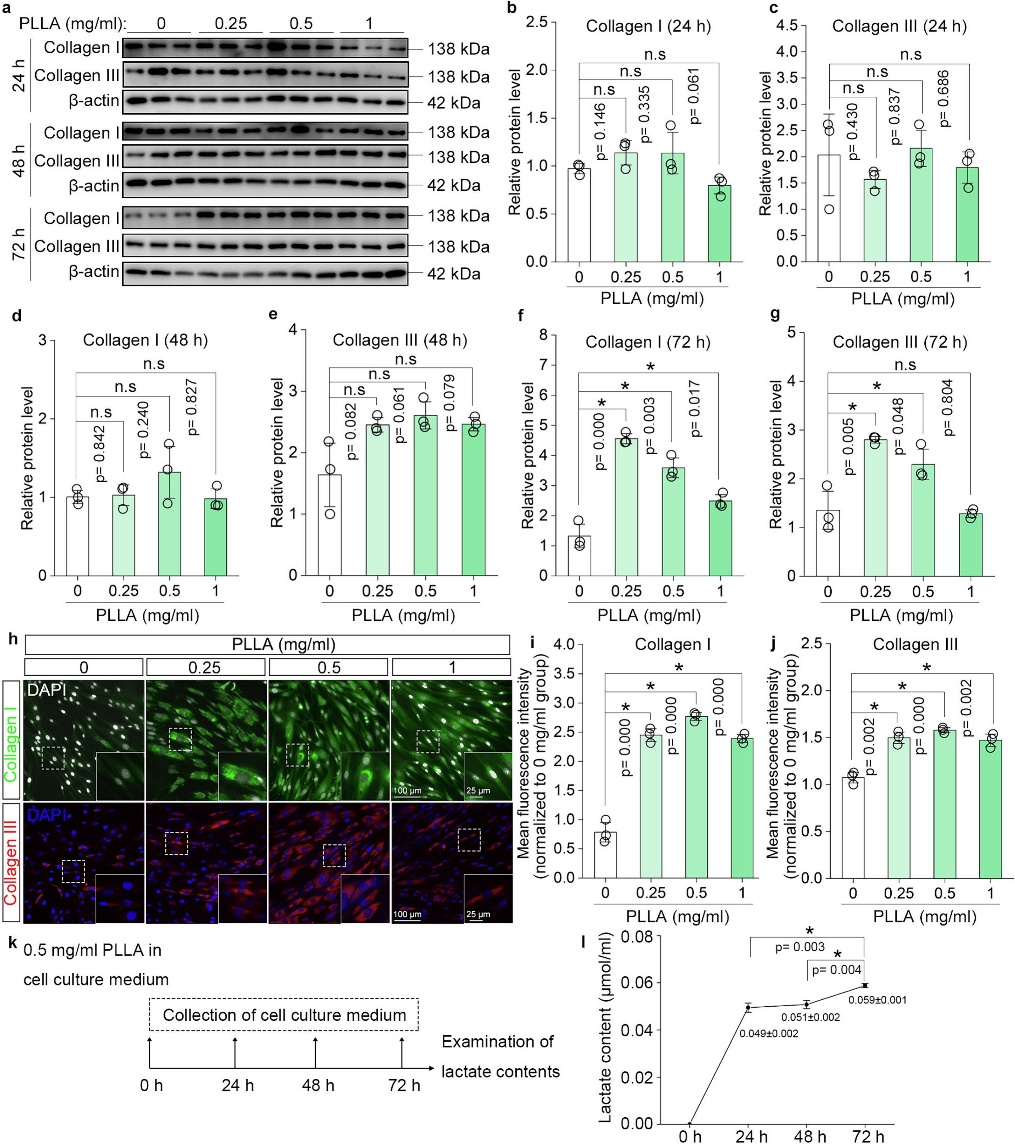
在使用不同浓度梯度的PLLA(0、0.25、0.5、1、5、25和50 mg/ml)处理成纤维细胞72 h后,对其细胞安全性进行了评估。细胞活性和存活率分别通过CCK8和Calcein-AM/PI染色进行检测。CCK8实验显示,当PLLA浓度超过5 mg/ml时,细胞活性显著下降(图S1a和b),但当浓度低于1 mg/ml时,细胞活性反而有所提高(图S1c和d)。Calcein-AM/PI染色结果显示,当PLLA浓度低于1 mg/ml时,死细胞数量并无显著增加(图S1e和f)。此外,EdU实验结果表明,PLLA显著促进了成纤维细胞的增殖(图S1g和h)。上述结果提示,低浓度的PLLA作为乳酸来源对细胞是安全的。随后评估了PLLA对成纤维细胞胶原蛋白合成的影响。Western blot检测胶原蛋白I和III显示,在使用0.25或0.5 mg/ml PLLA处理72 h后,成纤维细胞中胶原蛋白表达显著上调(图1a–1g)。免疫荧光染色进一步验证了PLLA可促进成纤维细胞胶原蛋白I和III的表达(图1h、i和j)。此外,PLLA在培养过程中释放乳酸,分别于24、48和72 h收集上清液以检测乳酸含量(图1k)。结果如图1l所示,PLLA随时间推移逐渐向培养基中释放乳酸。尤其在72 h时,乳酸浓度显著高于24和48 h的水平。这些结果表明,PLLA能够有效诱导成纤维细胞合成胶原蛋白。
图S1. 评估PLLA对人成纤维细胞的安全性。将BJ细胞用不同浓度(0、0.25、0.5、1、5、25和50 mg/ml)的PLLA处理72 h。(a, c)通过相差显微镜观察细胞形态。(b, d)使用细胞计数试剂盒-8(CCK8)评估细胞活力。“n.s”表示无显著性差异,*p < 0.05。(e, f)采用Calcein-AM/PI双染法检测存活细胞比例,n = 3个独立实验,“n.s”表示无显著性差异,*p < 0.05。(g, h)通过EdU实验检测细胞增殖,增殖率相对于对照组归一化,n = 3个独立实验,*p < 0.05。
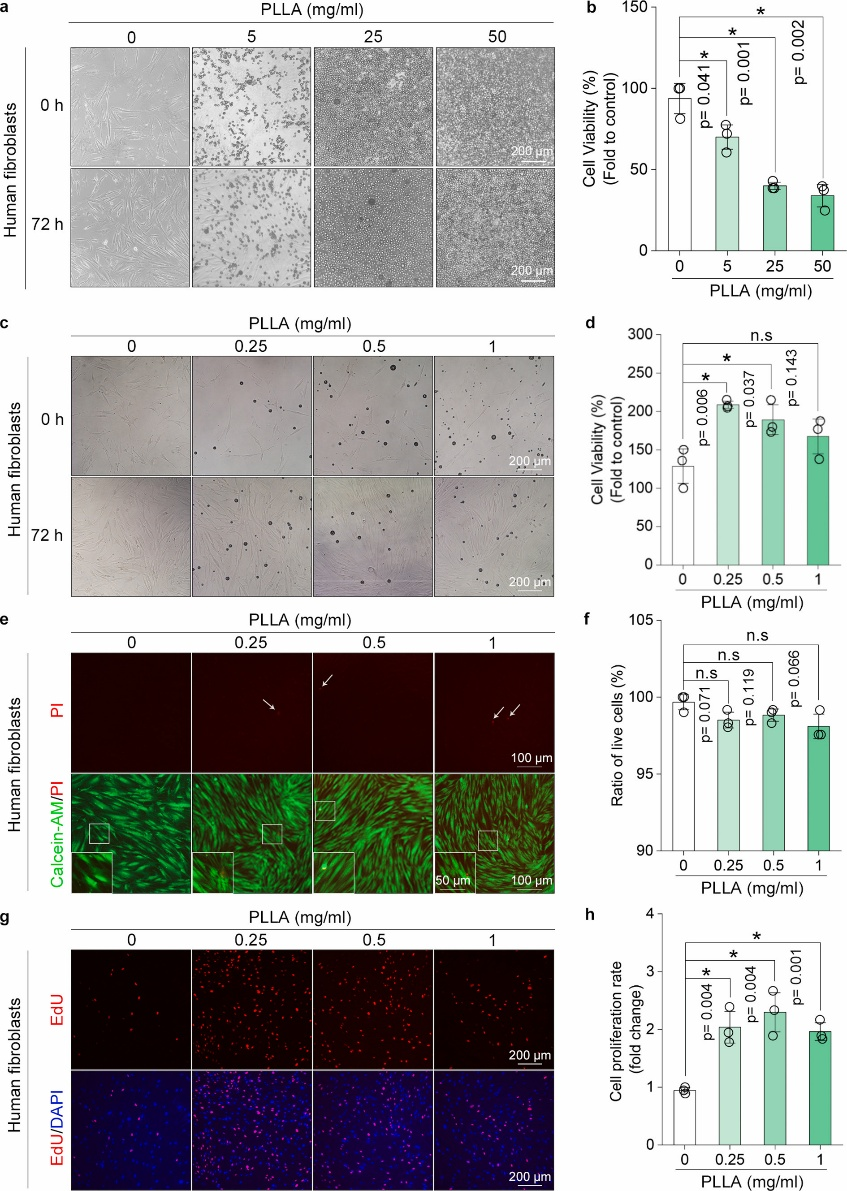
图1. PLLA处理诱导成纤维细胞中胶原蛋白合成。(a) 通过Western blotting检测人在成纤维细胞中不同浓度PLLA处理24、48或72 h后胶原蛋白I和胶原蛋白III的表达,n = 3个独立重复实验,未处理PLLA的人成纤维细胞作为对照组。(b-g) 胶原蛋白I和胶原蛋白III的相对蛋白水平经β-actin归一化,"n.s"表示无显著性差异,*p < 0.05表示具有统计学意义。(h) 免疫荧光染色代表图像显示PLLA处理72 h后人成纤维细胞中胶原蛋白I(绿色)和胶原蛋白III(红色)的表达。(i, j) 胶原蛋白I和胶原蛋白III在成纤维细胞中的平均荧光强度相对于0 mg/ml PLLA处理的对照组进行归一化,n = 3个独立实验,*p < 0.05表示具有统计学意义。(k, l) PLLA以0.5 mg/ml的浓度溶于含10% FBS的DMEM培养基中,置于1.5 ml离心管中,PLLA释放乳酸,并在24、48和72 h收集上清液以检测乳酸含量,*p < 0.05表示具有统计学意义。
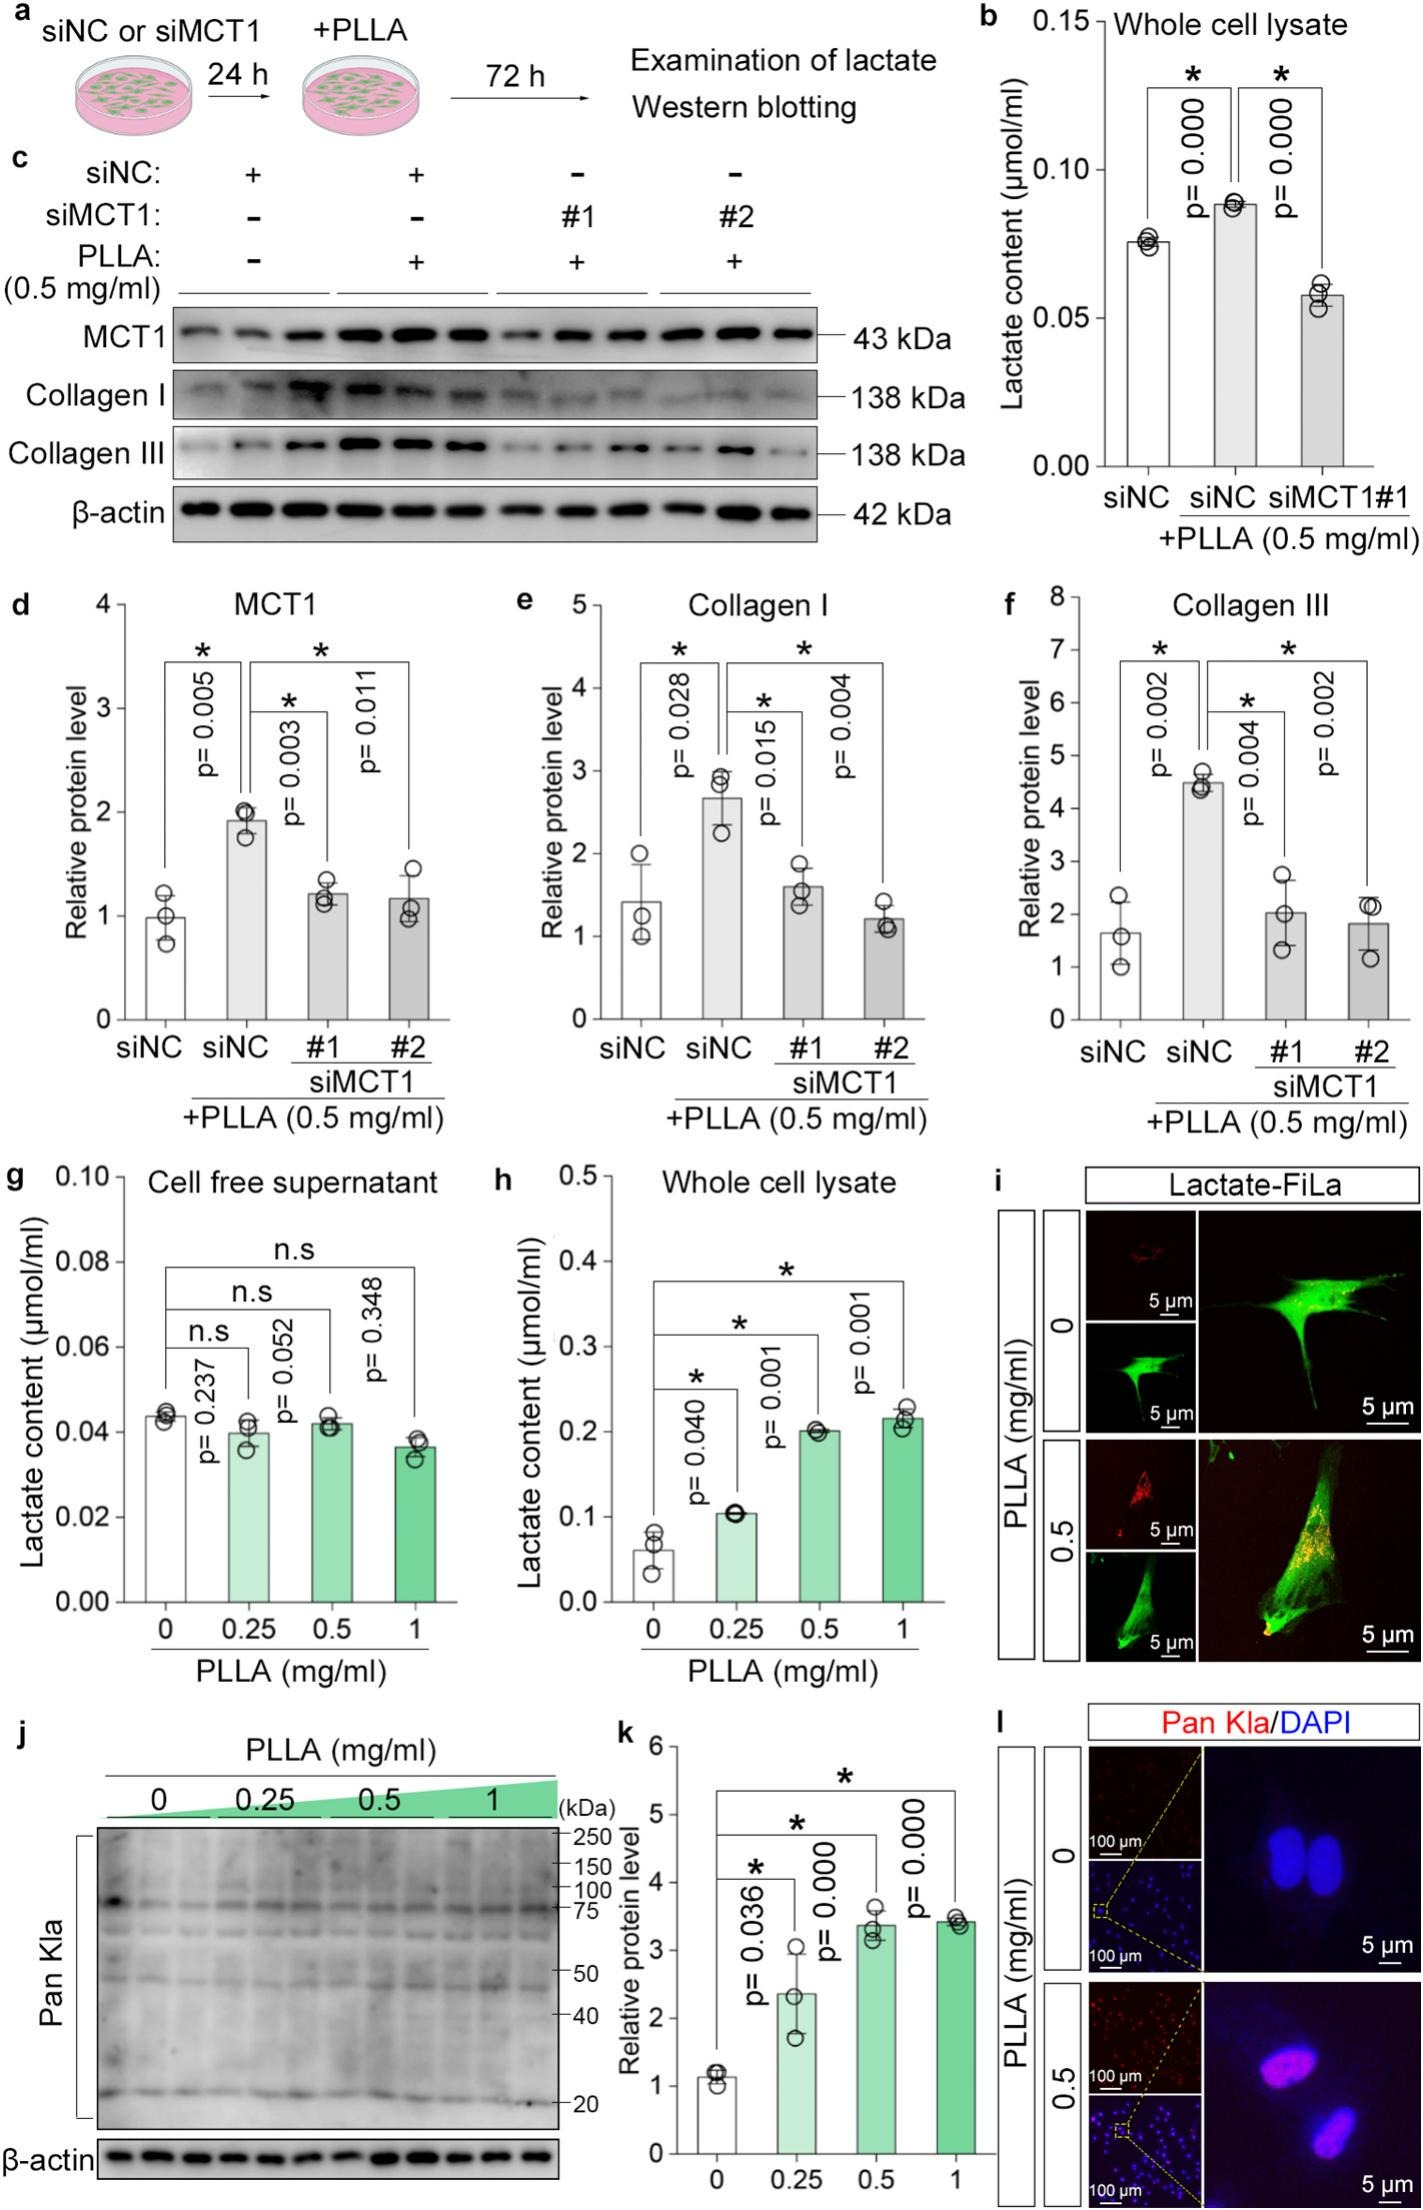
鉴于MCT1在细胞间乳酸穿梭过程中的关键作用[9],我们假设抑制MCT1可以阻止乳酸进入成纤维细胞。为此设计了三对siRNA用于沉默MCT1的表达,Western blot分析显示siMCT1#1和siMCT1#2对MCT1表达具有最显著的抑制作用(图S2a和b),因此选择这两对siRNA用于后续实验。为验证成纤维细胞是否通过MCT1摄取PLLA释放的乳酸,将BJ细胞转染MCT1 siRNA或siNC 24 h后,继续用0.5 mg/ml PLLA处理72 h(图2a)。结果显示,相较于siNC组,MCT1敲低显著降低了细胞内乳酸水平(图2b),表明成纤维细胞确实通过MCT1摄取PLLA释放的乳酸。值得注意的是,MCT1的敲低消除了乳酸依赖的胶原蛋白合成效应(图2c–2f)。进一步检测PLLA处理的成纤维细胞中细胞上清液及全细胞裂解液中的乳酸水平,结果显示细胞内乳酸水平升高,而胞外乳酸水平无显著变化(图2g和h)。采用乳酸荧光传感器FiLa对细胞内乳酸水平进行检测,观察到在培养基中添加外源PLLA后,细胞内荧光强度饱和性增强,表明乳酸穿过细胞膜被摄取至胞内(图2i)。Western blot结果表明,PLLA处理可上调组蛋白乳酸化(Pan Kla)水平(图2j和k),免疫荧光染色亦进一步验证了这一现象(图2l)。综上所述,这些结果说明,成纤维细胞可通过MCT1摄取由PLLA释放的胞外乳酸,并上调Pan Kla水平,从而促进胶原蛋白的合成。
图S2. (a, b) Western blotting用于分析人成纤维细胞在转染对照siRNA(siNC)或靶向MCT1的siRNA后MCT1的表达情况,并对MCT1的相对蛋白水平进行定量分析,n = 3个独立重复实验,*p < 0.05表示具有统计学意义。
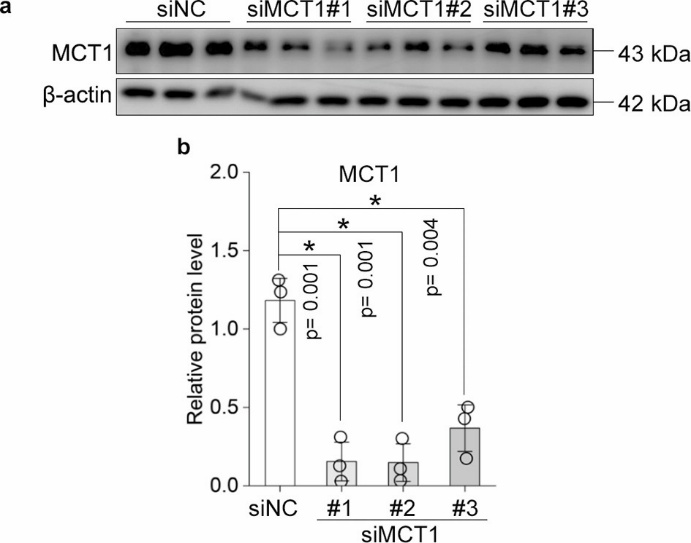
图2. MCT1介导乳酸进入成纤维细胞并提高Pan Kla水平。(a)将人成纤维细胞用siNC或siMCT1处理24 h后,再用0.5 mg/ml的PLLA处理72 h。(b) 检测细胞内乳酸含量,结果显示在PLLA存在的条件下,相较于siNC组,成纤维细胞内乳酸水平下降,*p < 0.05表示具有统计学意义。(c) Western blotting检测在0.5 mg/ml PLLA作用下敲低MCT1后人成纤维细胞中MCT1、collagen I和collagen III的表达水平,n = 3个独立重复实验。(d-f) 对MCT1、collagen I和collagen III蛋白水平进行定量分析,结果表明敲低MCT1抑制了PLLA诱导的胶原合成,*p < 0.05表示具有统计学意义。(g, h) 检测不同浓度PLLA处理72 h后人成纤维细胞的无细胞上清液和全细胞裂解液中的乳酸含量,n = 3个独立重复实验,‘n.s’表示无统计学差异,*p < 0.05表示具有统计学意义。(i) 采用荧光显微成像观察0.5 mg/ml PLLA处理72 h后的人成纤维细胞中FiLa表达,以可视化细胞内乳酸水平。(j, k) Western blotting分析不同浓度PLLA处理72 h后人成纤维细胞中Pan Kla水平,并将蛋白水平标准化为β-actin,n = 3个独立重复实验,*p < 0.05表示具有统计学意义。(l) 代表性免疫荧光图像显示处理0.5 mg/ml PLLA 72 h后人成纤维细胞中Pan Kla(红色)表达情况,DAPI(蓝色)标记细胞核。
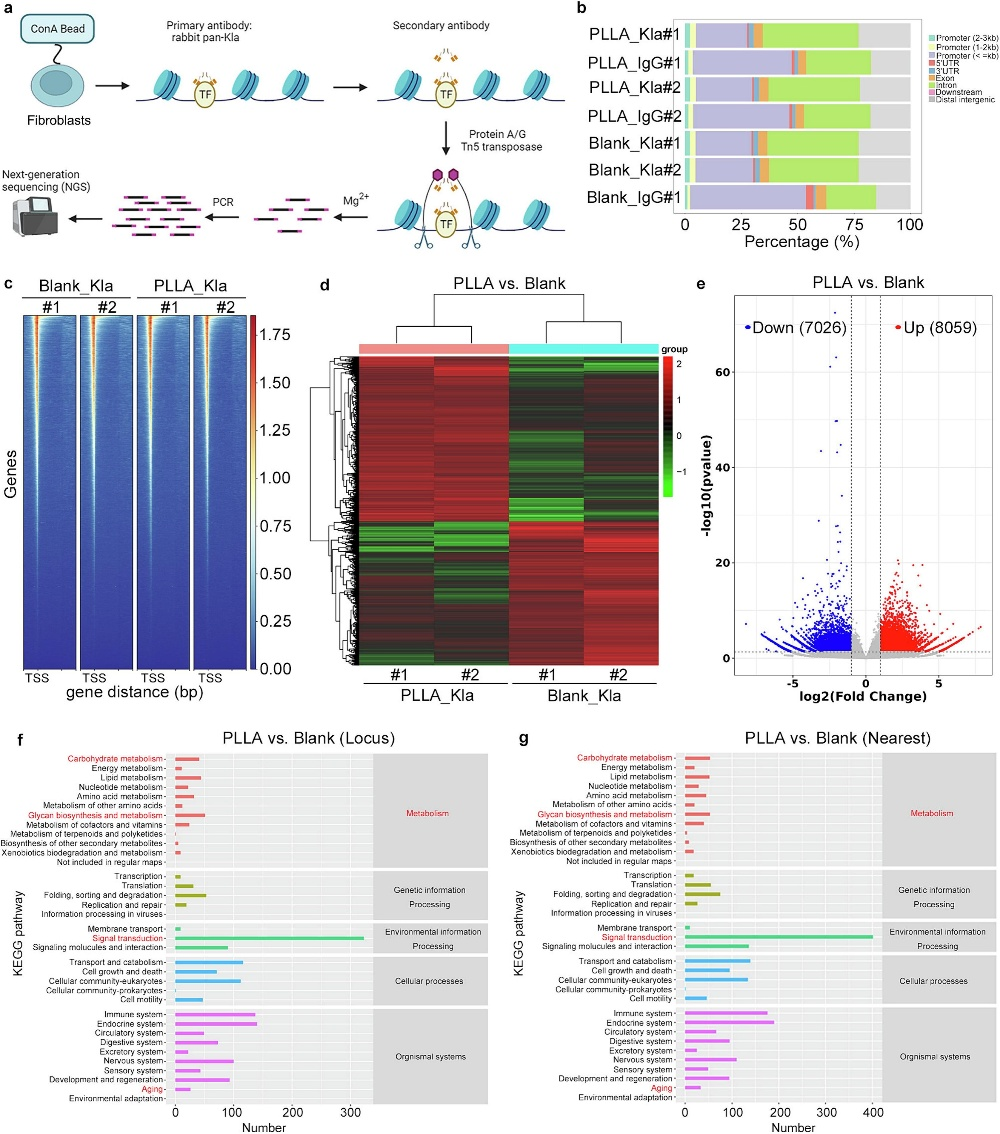
为探究乳酸在胶原蛋白合成中的潜在机制,对BJ细胞进行0.5 mg/ml PLLA处理72 h后,开展CUT&Tag与RNA-seq分析。鉴于已有研究表明乳酸可影响组蛋白或非组蛋白的乳酸化修饰[7,11],我们进一步探索乳酸是否通过蛋白乳酸化途径调控胶原蛋白合成。首先,利用Pan Kla抗体进行全基因组CUT&Tag分析(图3a),结果显示与对照组相比,PLLA处理组细胞中Pan Kla富集峰显著增强(图S3)。对这些峰在基因组中的分布进行可视化(图3b和图S4),并筛选出与转录起始位点(TSS)区域相邻的Pan Kla结合基因(图3c)。进一步分析发现,在PLLA处理后的成纤维细胞中,共有7026个基因表达下调,8059个基因表达上调(图3d和e),并通过基因本体(GO)分析将其归类至多个KEGG通路(图3f和g),这些通路主要涉及代谢、信号转导和衰老等生物学过程。RNA-seq数据显示,PLLA处理后BJ细胞中共有1260个基因上调,1717个基因下调(图4a、b和c),对这些显著差异表达基因进行GO和KEGG分析发现,其显著富集于胶原组织重构、细胞外基质、胶原结合、胶原生物合成及胶原降解等相关通路(图4d和e)。
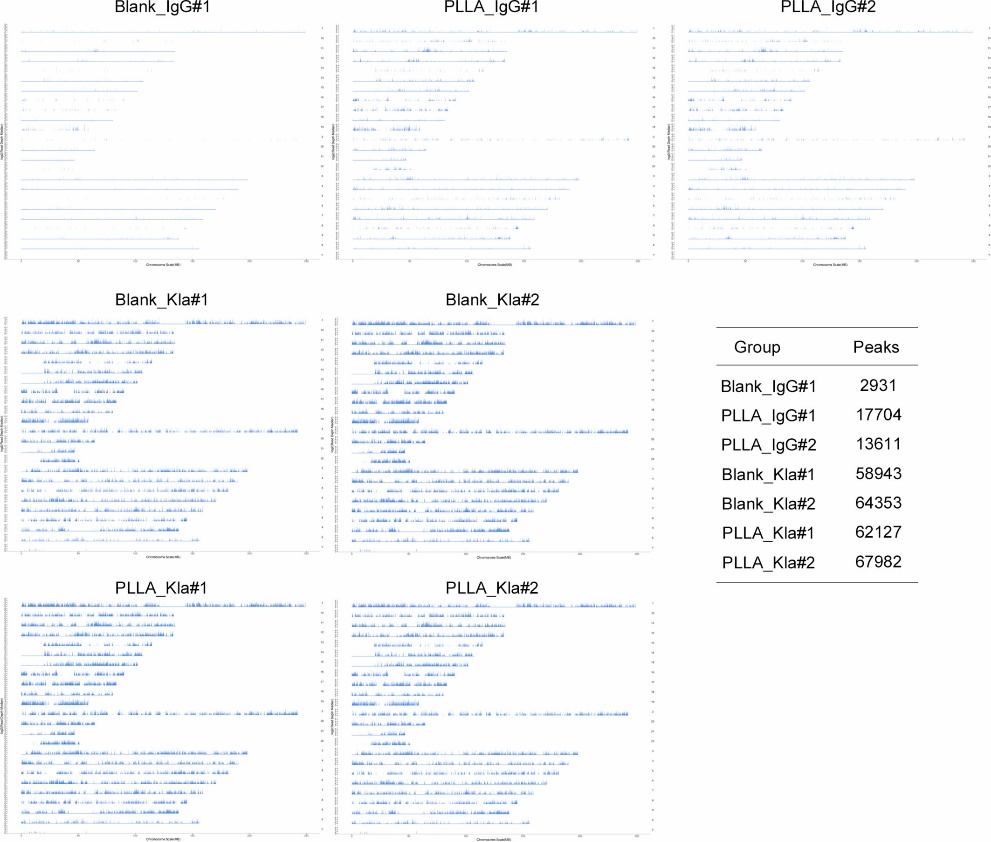
图3. 使用CUT&Tag分析识别Pan Kla在人类成纤维细胞中的潜在下游靶点。(a) 72小时后收集PLLA处理的BJ细胞,用Pan Kla抗体进行CUT&Tag分析的示意图。(b) 展示PLLA处理和未处理人类成纤维细胞中Pan Kla结合峰的基因组分布。(c) 使用deepTools可视化Pan Kla的结合密度,TSS表示转录起始位点。(d) 通过热图展示对照组和PLLA处理后成纤维细胞之间差异表达基因的变化。(e) 火山图显示基因表达的总体变化,揭示在PLLA处理的成纤维细胞中与对照组相比,有7026个基因下调,8059个基因上调。(f, g) 富集的KEGG通路分析突出了与“代谢”、“遗传信息处理”、“环境信息处理”、“细胞过程”和“有机体系统”相关的差异表达基因。
图S3. 将BJ细胞处理0.5 mg/ml的PLLA 72小时后,进行CUT&Tag分析,与对照组相比,PLLA处理的细胞中Pan Kla结合峰富集。
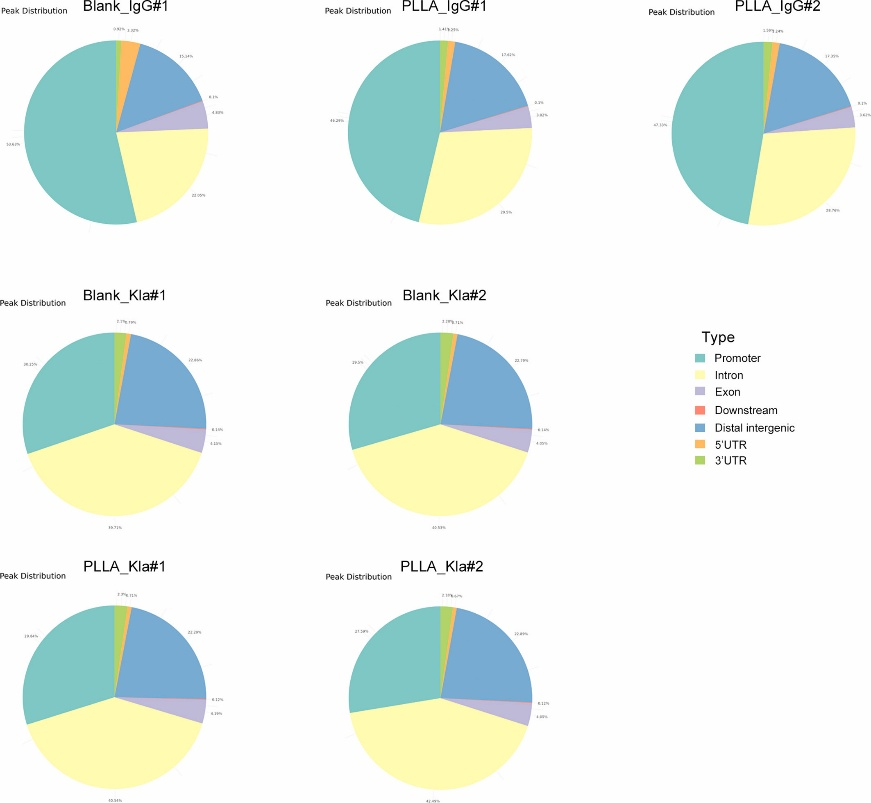
图S4. 在PLLA处理的细胞中,Pan Kla峰在基因组中的分布与对照组的比较。
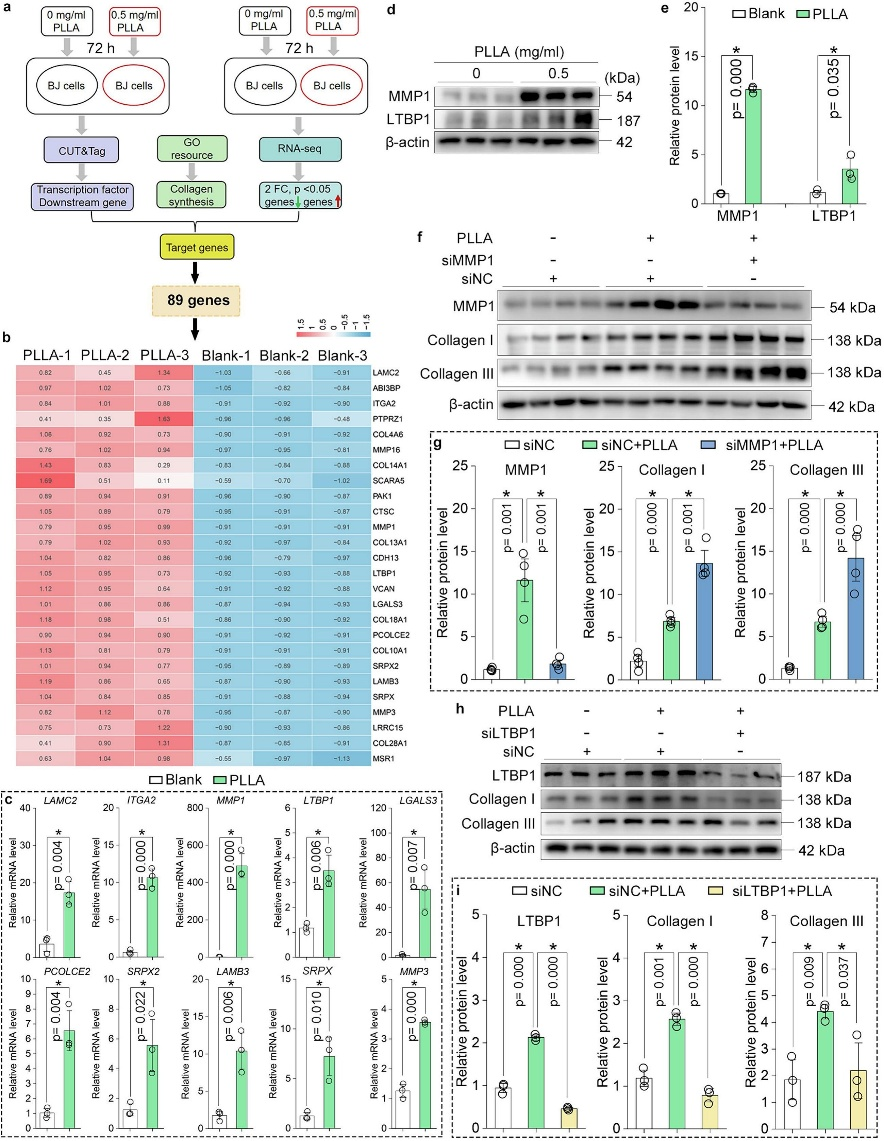
图4. RNA-seq分析鉴定PLLA处理后成纤维细胞中的潜在下游靶标。(a, b)将人类成纤维细胞暴露于0.5 mg/ml的PLLA 72小时,未处理的细胞作为对照组。对这些细胞进行了RNA-seq分析,结果在成纤维细胞中鉴定出1260个上调基因和1717个下调基因。通过火山图展示基因表达的整体变化。(c)使用热图展示对照组和PLLA处理的成纤维细胞之间的差异基因表达。(d, e)对所有差异表达基因进行了富集GO分析,突出了它们在胶原合成相关关键过程中的作用。
通过整合CUT&Tag数据、RNA-seq数据以及GO数据库中的基因信息,共筛选出89个潜在下游靶基因(图5a)。其中有26个基因在PLLA处理后显著上调,并通过聚类热图进一步分析其表达模式(图5b)。qPCR验证了若干候选基因的mRNA水平,包括LAMC2、ITGA2、MMP1、LTBP1、LGALS3、PCOLCE2、SRPX2、LAMB3、SRPX和MMP3(图5c和图S5)。其中,MMP1是基质金属蛋白酶(MMPs)家族成员,已知在炎症和皮肤老化过程中发挥重要作用[12];LTBP1则在TGFβ的细胞外基质(ECM)锚定及ECM组分的正确装配中具有关键功能[10]。基于其生物学意义,这两者被选为进一步研究对象。Western blotting结果显示,PLLA处理后成纤维细胞中MMP1和LTBP1蛋白水平升高(图5d和e)。随后通过siRNA敲低MMP1后发现胶原I和胶原III的表达水平升高(图5f和g),而敲低LTBP1则显著抑制了PLLA诱导的胶原I和胶原III表达(图5h和i)。这些结果表明LTBP1是介导乳酸诱导成纤维细胞胶原合成的重要靶点。
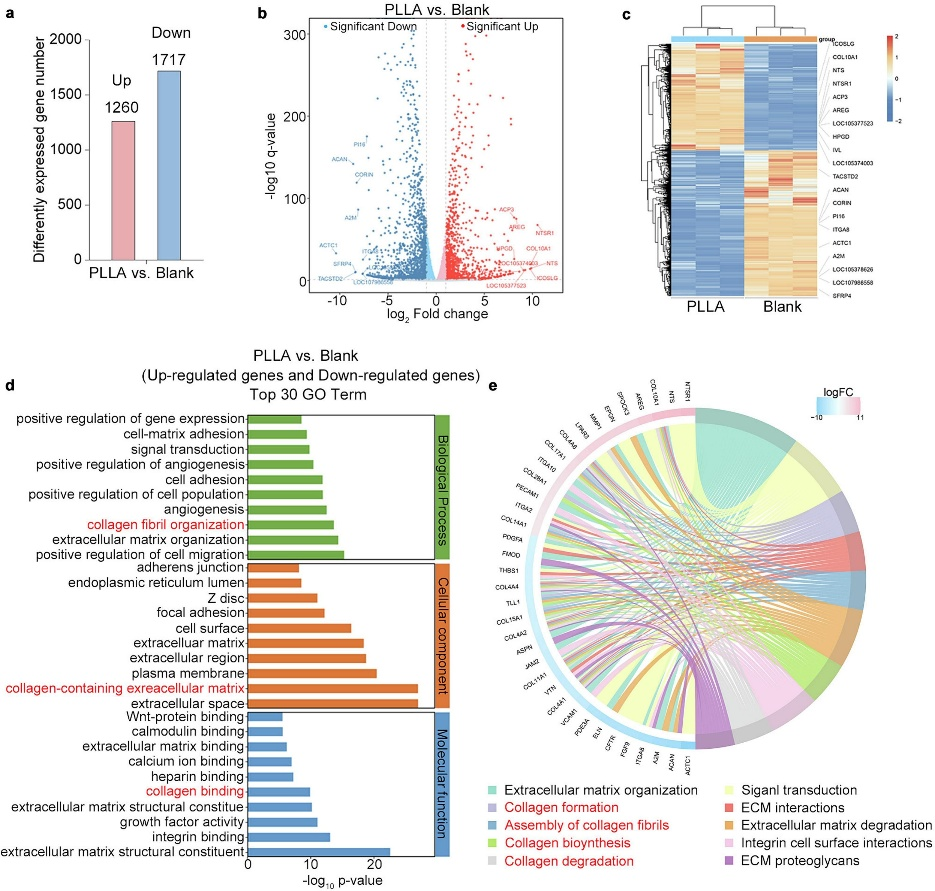
图5. LTBP1被鉴定为乳酸诱导成纤维细胞胶原合成的候选靶标。(a, b)通过结合CUT&Tag结果、GO资源和RNA-seq结果的数据分析,鉴定出乳酸和Kla的下游靶标。使用原始RNA-seq数据生成热图,展示这些候选基因的相对转录水平,数据可通过https://www.genescloud.cn/chart/HeatMap访问。(c)对候选基因的mRNA水平进行qPCR分析,比较有无PLLA处理的人类成纤维细胞,n = 3独立实验,*p < 0.05表示统计学显著性。(d, e)对PLLA处理或未处理的人类成纤维细胞中的MMP1和LTBP1蛋白水平进行Western blot分析,并量化蛋白水平,n = 3独立实验,*p < 0.05。(f, g)对MMP1敲降(通过siRNA转染)后有无PLLA处理的人类成纤维细胞中的MMP1、胶原I和胶原III蛋白水平进行Western blot分析,并量化蛋白水平,n = 4独立实验,*p < 0.05表示统计学显著性。(h, i)对LTBP1敲降(通过siRNA转染)后有无PLLA处理的人类成纤维细胞中的LTBP1、胶原I和胶原III蛋白水平进行Western blot分析,并量化蛋白水平,n = 3独立实验,*p < 0.05表示统计学显著性。
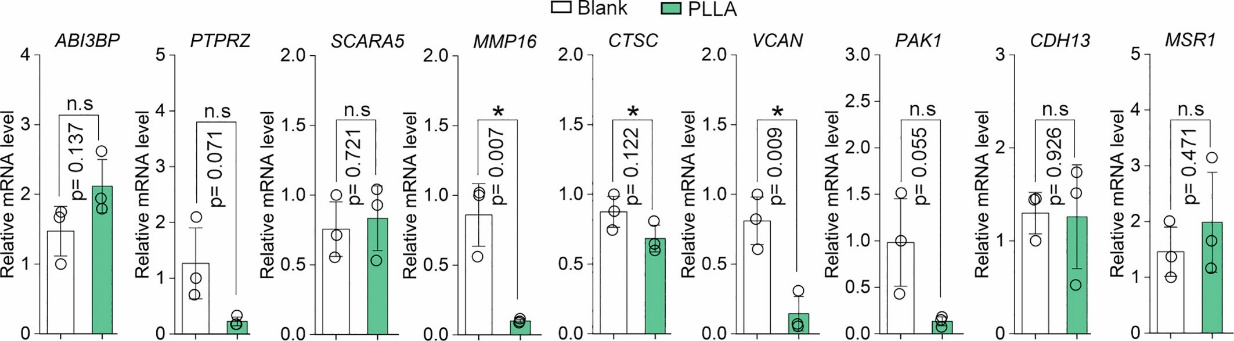
图S5. BJ细胞在0.5 mg/ml PLLA处理72小时后,进行了qPCR检测,确认了特定候选基因的mRNA水平,包括ABI3BF、PTPRZ、SCARA5、MMP16、CTSC、VCAN、PAK1、CDH13和MSR1。
为探究该机制,将Flag-LTBP1转染至BJ细胞中,并用PLLA处理72 h,随后利用Flag抗体对LTBP1进行免疫共沉淀,结果发现PLLA处理后LTBP1的乳酸化水平显著升高(图6a)。预测实验识别出LTBP1上多个潜在乳酸化赖氨酸位点(K250、K255、K256、K752、K1075和K1716)以及可能介导乳酸化的酰基转移酶(KAT2A、KAT3B、KAT8和CREBBP)(图6b),其中K752在人(Homo sapiens)、小鼠(Mus musculus)和大鼠(Rattus norvegicus)中进化高度保守。将LTBP1的K752突变为精氨酸(K752R)后,其乳酸化水平显著下降,说明K752是LTBP1乳酸化的关键位点(图6d)。进一步研究发现,PLLA处理可上调成纤维细胞中KAT8的表达(图6e和f),且KAT8与LTBP1之间存在蛋白互作关系(图6g)。考虑到p300是最常报道的酰基转移酶[13],我们检测了PLLA处理后成纤维细胞中p300的表达水平,结果显示无显著变化(图S6)。为了明确乳酸化LTBP1在胶原合成中的功能作用,将载体或LTBP1突变体(K752R)转染至BJ细胞,并在有或无PLLA处理条件下进行比较,Western blotting结果显示,K752R突变显著降低了胶原I和胶原III的表达(图6h和i)。此外,使用siRNA敲低KAT8同样验证了其对PLLA诱导胶原I和胶原III表达的正向调控作用(图6j和k),免疫荧光结果进一步支持上述发现(图6l和m)。在此基础上,在敲低KAT8的人成纤维细胞中,分别给予或不给予0.5 mg/ml PLLA处理72 h,Western blotting检测KAT8和Pan Kla蛋白水平,结果显示在未受PLLA刺激的条件下,KAT8敲低不影响Pan Kla水平,而在PLLA处理后,KAT8敲低显著抑制了Pan Kla水平的上升(图S7a和b)。进一步通过免疫共沉淀拉下LTBP1蛋白,并使用Pan Kla抗体检测其乳酸化水平,结果表明PLLA处理显著增强了LTBP1乳酸化,而该效应在KAT8敲低后被显著抑制(图S7c)。综上所述,这些结果表明,在PLLA释放乳酸的条件下,KAT8与LTBP1相互作用,增强其K752位点的乳酸化水平,从而促进成纤维细胞中胶原的合成。
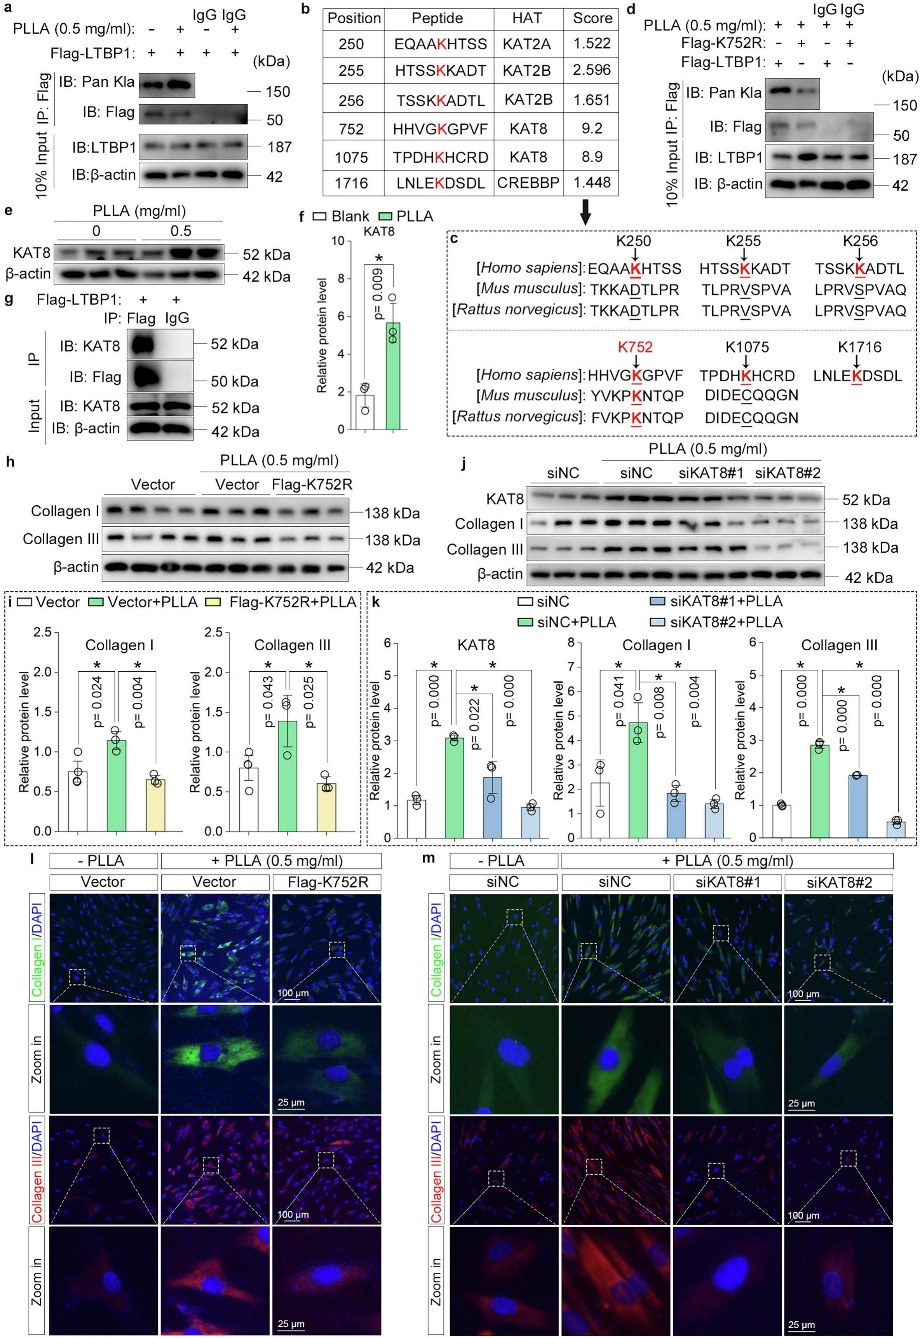
图6. 乳酸通过在赖氨酸752处诱导LTBP1乳酸化,促进成纤维细胞中的胶原合成。(a)将Flag-LTBP1质粒转染到BJ细胞中,并处理有或没有0.5 mg/ml PLLA 72小时。使用Flag抗体拉下LTBP1,并使用Pan Kla抗体进行免疫印迹(IB)分析,以检测LTBP1的乳酸化水平。输入对照,代表细胞裂解液总蛋白的10%,用于确定内源性LTBP1和β-actin的表达。(b, c)预测实验鉴定了LTBP1乳酸化所需的特定位点(K250、K255、K256、K752、K1075和K1716)以及酰基转移酶(KAT2A、KAT2B、KAT8和CREBBP),其中仅K752在Homo sapiens(人类)、Mus musculus(小鼠)和Rattus norvegicus(大鼠)之间的LTBP1蛋白中进化保守。(d)将Flag-LTBP1质粒或Flag-K752R突变质粒转染到BJ细胞中,并处理0.5 mg/ml PLLA 72小时。使用Flag抗体拉下LTBP1,并使用Pan Kla抗体进行IB分析,以检测LTBP1的乳酸化水平。输入对照,代表细胞裂解液总蛋白的10%,用于确定内源性LTBP1和β-actin的表达。(e, f)使用Western blot分析处理或未处理0.5 mg/ml PLLA的人类成纤维细胞中的KAT8蛋白水平,并量化蛋白水平,n = 3独立实验,*p < 0.05表示统计学显著性。(g)将Flag-LTBP1质粒转染到人类成纤维细胞中,使用KAT抗体和Flag抗体通过免疫共沉淀(IP)评估KAT8与LTBP1之间的蛋白质相互作用。输入对照,代表细胞裂解液总蛋白的10%,用于确定内源性KAT8和β-actin的表达。(h, i)Western blot分析转染质粒或Flag-K752R突变质粒的人类成纤维细胞中胶原I和胶原III的蛋白水平,并量化蛋白水平,n = 3独立实验,*p < 0.05表示统计学显著性。(j, k)Western blot分析KAT8敲降后人类成纤维细胞中胶原I和胶原III的蛋白水平,并量化蛋白水平,n = 3独立实验,*p < 0.05表示统计学显著性。(l)代表性免疫荧光染色图像显示转染质粒或Flag-K752R突变质粒的人类成纤维细胞中的胶原I和胶原III,处理与否的PLLA。(m)代表性免疫荧光染色图像显示KAT8敲降后的人类成纤维细胞中胶原I和胶原III的情况,处理与否的PLLA。
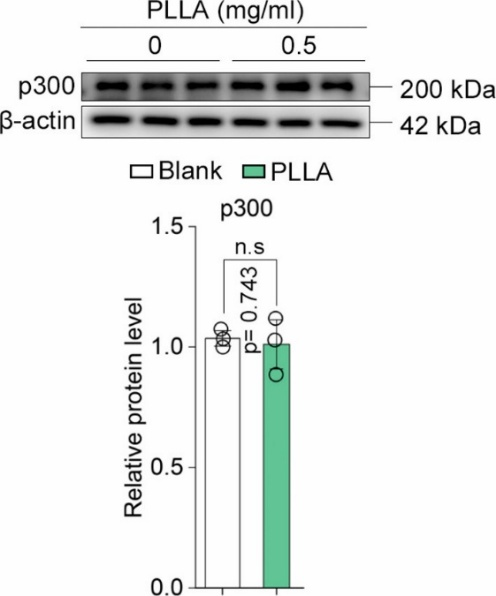
图S6. 对是否经PLLA处理的BJ细胞进行p300的蛋白免疫印迹(Western blotting)分析,并对蛋白水平进行定量分析,n = 3个独立重复实验,‘n.s’表示无显著性差异。
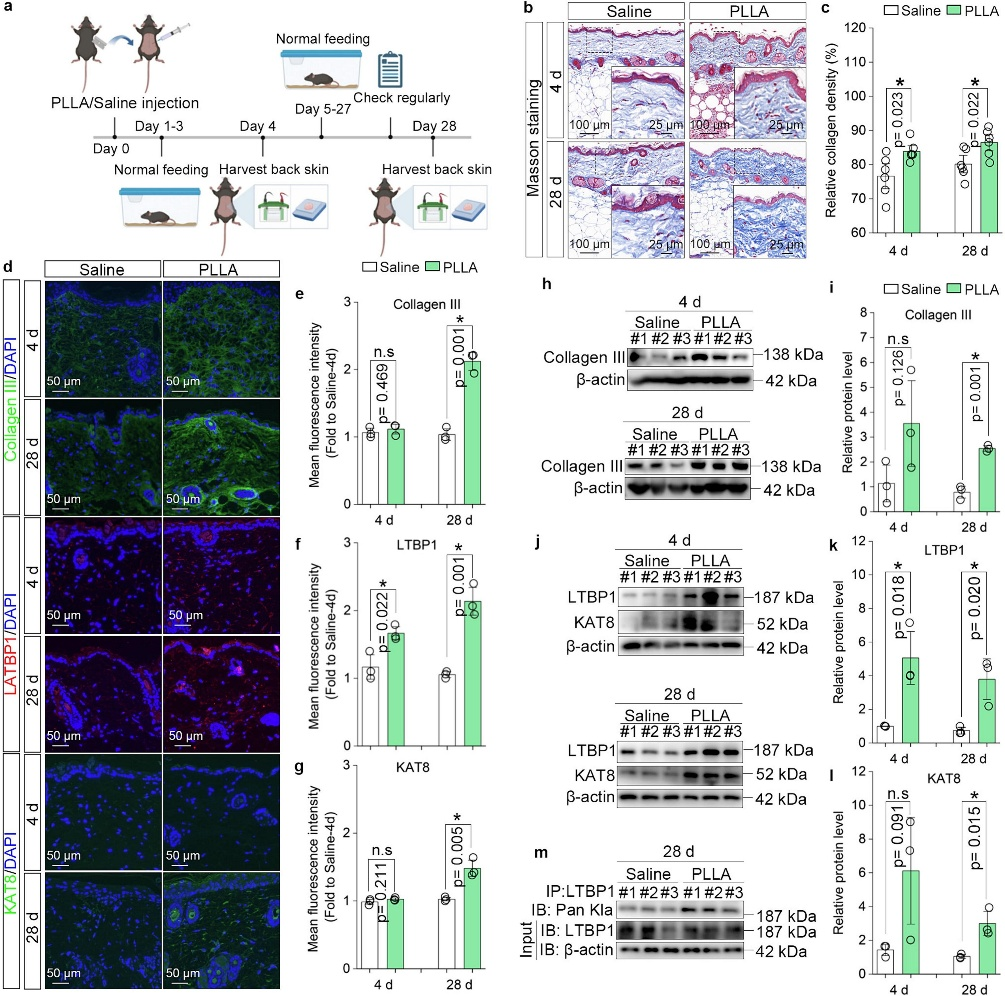
图S7. (a, b) 通过siRNA沉默KAT8表达后,将人成纤维细胞在含有10% FBS的DMEM培养基中培养72小时,培养条件包括有或无0.5 mg/ml PLLA处理。采用蛋白免疫印迹(Western blotting)检测KAT8蛋白水平及全乳酸化(Pan Kla)水平,‘n.s’表示无显著性差异,*p < 0.05表示具有统计学意义。 (c) 在KAT8沉默后,使用免疫沉淀(IP)方法拉下LTBP1蛋白,并采用Pan Kla抗体检测LTBP1的乳酸化水平。
在体实验中,将PLLA或生理盐水注射至12月龄小鼠背部皮肤中,分别于注射后第4天和第28天采集皮肤样本进行检测(图7a)。Masson染色显示,与对照组相比,注射PLLA后老年小鼠皮肤中胶原密度升高,尤其在注射28天后更加显著(图7b和c)。考虑到胶原III是初生胶原,有助于皮肤再生[14],进一步进行免疫荧光染色,结果表明PLLA处理后胶原III显著增加(图7d和e)。此外,观察到PLLA注射后皮肤真皮层中LTBP1和KAT8的表达明显升高,该趋势在注射28天时尤为显著(图7d、f和g)。随后,通过Western blotting验证了胶原III、LTBP1和KAT8的表达变化,结果显示,注射PLLA后28天,胶原III表达显著升高(图7h和i),同时LTBP1和KAT8的表达也呈明显上调(图7j–7l)。上述结果表明,PLLA释放的外源性乳酸可通过上调LTBP1和KAT8的表达促进老年小鼠皮肤年轻化。最后,通过体内验证实验检测PLLA处理组与对照组小鼠皮肤中LTBP1蛋白的乳酸化水平,结果显示PLLA能够提高LTBP1的乳酸化水平(图7m)。
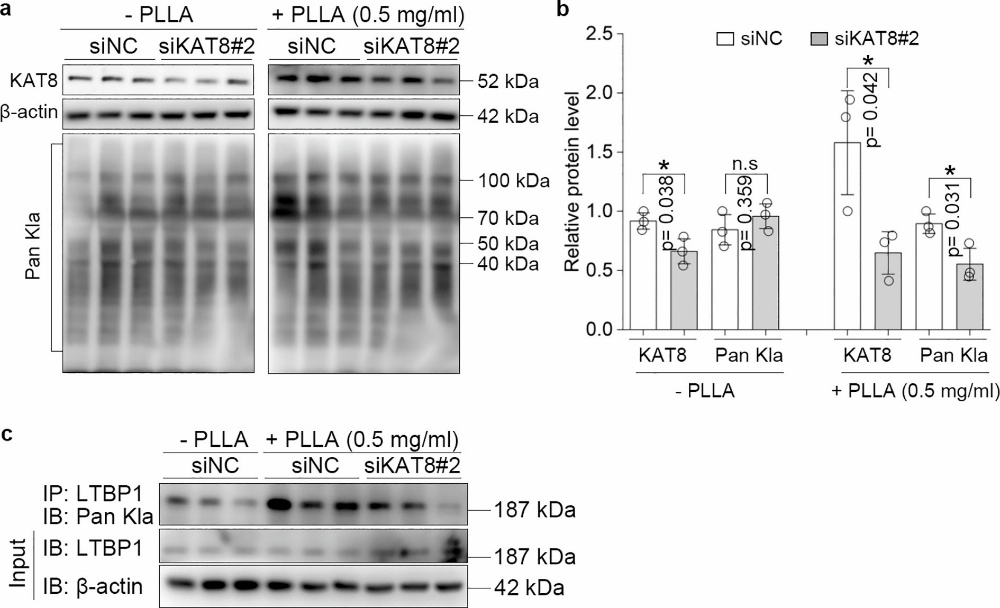
图7. 使用PLLA外源性乳酸的施用通过提高LTBP1和KAT8的表达水平促进衰老小鼠的皮肤再生。(a)实验方案包括将PLLA或生理盐水注射到衰老小鼠的皮肤中,随后在注射后4天或28天收集皮肤样本进行分析。(b)对注射生理盐水或PLLA的小鼠样本进行Masson染色,显示胶原纤维为蓝色,细胞质为红色,细胞核为深紫色。(c)皮肤中胶原的相对密度进行了量化,n = 6只小鼠/组,*p < 0.05表示统计学显著性。(d)代表性免疫荧光染色图像显示了盐水和PLLA注射组的皮肤样本中的胶原III、LTBP1和KAT8。(e-g)测量胶原III、LTBP1和KAT8的平均荧光强度,n = 3只小鼠/组,‘n.s’表示无显著性,*p < 0.05表示统计学显著性。(h, i)对衰老小鼠皮肤样本中的胶原III蛋白水平进行Western blot分析,在盐水或PLLA注射后的4天或28天进行蛋白水平量化,n = 3只小鼠/组,*p < 0.05表示统计学显著性。(j, k, l)对衰老小鼠皮肤样本中的LTBP1和KAT8蛋白水平进行Western blot分析,在盐水或PLLA注射后的4天或28天进行蛋白水平量化,n = 3只小鼠/组,*p < 0.05表示统计学显著性。(m)从注射盐水或PLLA后28天的小鼠皮肤组织中提取蛋白,用LTBP1抗体拉下LTBP1蛋白,使用Pan Kla抗体通过免疫印迹(IB)分析检测乳酸化LTBP1水平,输入对照,代表细胞裂解液总蛋白的10%,用于确定内源性LTBP1和β-actin的表达,n = 3只小鼠/组。
胶原蛋白作为人体皮肤的主要成分,在维持真皮结构完整性方面发挥着关键作用。其含量的减少会导致真皮结构破坏与塌陷,从而引发皮肤老化。研究表明,皮肤成纤维细胞是胶原蛋白的主要合成来源,促进该类细胞合成胶原蛋白是一种有效的抗皮肤老化策略[15,16]。乳酸曾被视为代谢过程中无生物学功能的代谢废物,但近年来被重新认识为一种多功能的信号分子,能够调节免疫炎症反应、血管生成以及组织再生等生理过程[5]。乳酸化是一种新型的蛋白质翻译后修饰(PTM),内源性或外源性乳酸均可促进组蛋白或非组蛋白的乳酸化,从而调控基因表达[17,18]。基于此,有研究假设乳酸可能通过乳酸化修饰参与皮肤老化过程的调控。
本研究选用人包皮成纤维细胞系BJ,旨在探讨皮肤真皮成纤维细胞的作用机制,依据以往研究结果选定该模型[19,20]。聚左旋乳酸(PLLA)被选作乳酸来源,是由于其相较于直接添加乳酸具有更缓慢和持续释放的特性。PLLA可代谢为水和乳酸,不会对细胞造成毒性或对实验结果产生干扰,而乳酸浓度过高反而可能诱发组织炎症而非再生[21]。本研究验证了PLLA对成纤维细胞的安全性,这一结果与既往研究一致[22,23]。在加入PLLA处理72小时后,成纤维细胞中观察到显著的胶原蛋白合成,提示PLLA释放乳酸并调控胶原表达具有一定时间延迟。乳酸进入细胞内的过程对于其调控基因表达至关重要,该过程主要由单羧酸转运蛋白(MCTs)介导,尤其是MCT1。乳酸水平变化通常伴随MCT1蛋白表达水平的变化[24]。本研究发现,PLLA诱导的胶原合成依赖于MCT1的存在,通过乳酸检测试剂盒和FiLa荧光传感器检测发现乳酸含量在细胞裂解液中升高,而在细胞上清中未见显著变化。FiLa传感器是一种遗传编码的乳酸荧光探针,可用于研究细胞、亚细胞器、动物体内及人体血清和尿液中的乳酸代谢[25]。根据乳酸穿梭假说,乳酸转运蛋白作为共转运体,通过顺浓度梯度协同转运阴离子和质子[26]。由于PLLA释放乳酸缓慢,胞外乳酸浓度高于胞内,促使乳酸持续进入成纤维细胞,进而诱导细胞内Pan Kla水平上升。
乳酰化(Lactylation)作为一种蛋白质翻译后修饰(PTM),广泛参与表观遗传调控和蛋白质翻译,通常发生在赖氨酸残基上[27]。然而,乳酰化在成纤维细胞中的特征、调控机制及其功能后果尚不明确。本研究结合CUT&Tag、RNA测序和体外实验发现,MMP1和LTBP1在乳酸诱导的胶原蛋白合成过程中显著上调,并发挥关键作用。CUT&Tag是一种研究蛋白与DNA相互作用的新型技术,能够精准筛选转录因子或组蛋白调控的下游基因[28]。MMP1是一种与皮肤炎症相关的蛋白,其水平随年龄增长而升高,是所谓“炎症性老化”(inflamm-aging)的特征之一,已知其可增强成纤维细胞中TNF-α的表达,加速胶原分解[12]。在PLLA存在下敲除MMP1后,胶原蛋白产量显著上升,提示MMP1的升高可能是对外源物质的应激反应,与既往研究结果一致[29]。此外,我们研究还发现LTBP1不仅表达上调且发生乳酰化,并能调控胶原I和胶原III的表达。LTBP1是细胞外基质中锚定TGFβ和组装ECM的重要蛋白,与皮肤松弛综合征(cutis laxa)密切相关[10]。与MMP1不同,我们发现敲除LTBP1显著抑制了乳酸诱导的胶原蛋白合成,强调了LTBP1及其乳酰化修饰在胶原合成调控中的潜在关键作用。乳酸化的机制涉及乳酰辅酶A将乳酰基转移到赖氨酸残基上,此过程由一类酰基转移酶催化,如p300/CBP、KAT2A/GCN5、KAT2B/PCAF等[30]。其中,p300长期被认为是赖氨酸乳酰化的关键酶[15]。但本研究中,在PLLA处理条件下并未发现p300参与LTBP1的乳酸化。相反,我们鉴定出KAT8是乳酸诱导LTBP1在赖氨酸752位点乳酸化及其下游胶原合成的必需酶。KAT8是一种赖氨酸乙酰转移酶,最近被认为是Pan Kla的关键“写入酶”,并在蛋白合成和结直肠癌发生中具有重要作用[31]。此外,我们在体内实验中选用了12月龄小鼠,依据前人研究经验[32],而非24月龄小鼠,因后者皮肤状况较差,可能影响实验结果。本研究首次揭示了乳酸通过蛋白翻译后修饰机制调控皮肤成纤维细胞胶原合成的关键作用,为抗衰老提供了潜在靶点。但本研究也存在一定的局限性。首先,尚未评估PLLA作为乳酸补充途径对皮肤的长期影响。其次,尚需通过转基因动物模型进一步研究乳酸对皮肤年轻化的调控机制。最后,未来还应探讨乳酸引发的炎症反应,尤其是巨噬细胞与成纤维细胞之间的相互作用对皮肤组织的影响。
总而言之,我们的研究表明,PLLA可作为乳酸的持续释放载体,其依赖于MCT1介导的转运进入成纤维细胞,并在LTBP1蛋白的K752位点诱导KAT8介导的乳酸化修饰过程。该过程对于维持细胞外基质和皮肤弹性至关重要,最终促进成纤维细胞中胶原蛋白的合成,从而实现皮肤的年轻化(图8)。本研究首次证实乳酸可通过蛋白质乳酸化这一翻译后修饰途径调控胶原蛋白的合成,提示乳酸在抗皮肤衰老方面具有潜在应用价值。
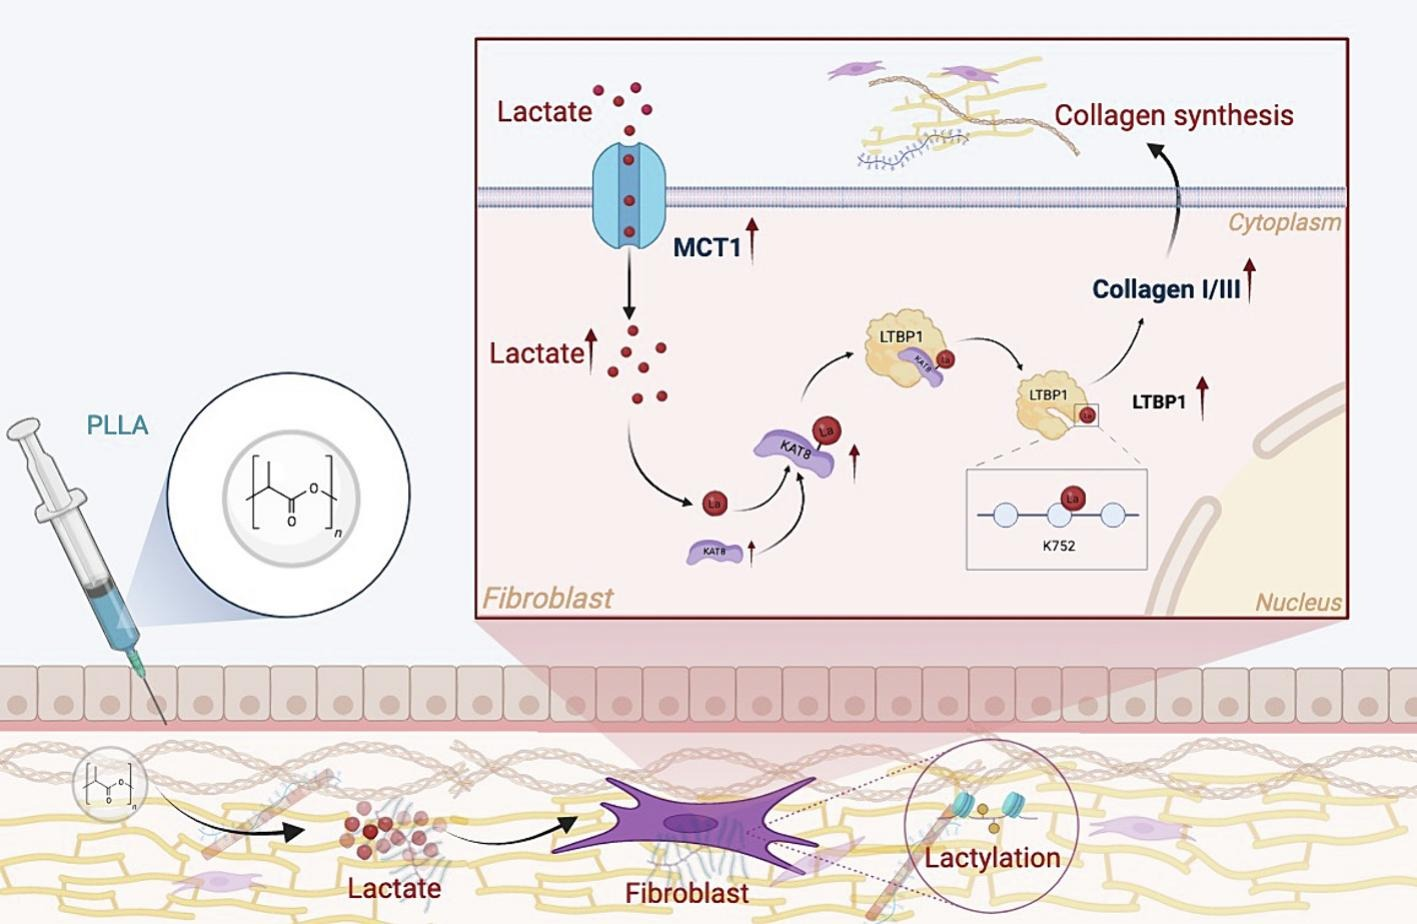
图8. 本研究的图示摘要。乳酸通过诱导KAT8介导的LTBP1在赖氨酸752位点的乳酸化修饰,促进成纤维细胞中胶原蛋白的合成,从而实现皮肤的年轻化。
[1] F. Gruber, C. Kremslehner, L. Eckhart, E. Tschachler, Cell aging and cellular senescence in skin aging - recent advances in fibroblast and keratinocyte biology, Exp. Gerontol. 130 (2020) 110780.
[2] L. Ritti´e, G.J. Fisher, Natural and sun-induced aging of human skin, Cold Spring Harb. Perspect. Med. 5 (2015) a015370.
[3] R. Fitzgerald, L.M. Bass, D.J. Goldberg, M.H. Graivier, Z.P. Lorenc, Physiochemical characteristics of poly-L-lactic acid (PLLA), Aesthet. Surg. J. 38 (2018) S13–s17.
[4] S. Oh, J.H. Lee, H.M. Kim, S. Batsukh, M.J. Sung, T.H. Lim, M.H. Lee, K.H. Son, K. Byun, Poly-L-lactic acid fillers improved dermal collagen synthesis by modulating M2 macrophage polarization in aged animal skin, Cells 12 (2023) 1420.
[5] M. Certo, A. Llibre, W. Lee, C. Mauro, Understanding lactate sensing and signalling, Trends Endocrinol. Metab. 33 (2022) 722–735.
[6] D. Zhang, Z. Tang, H. Huang, G. Zhou, C. Cui, Y. Weng, W. Liu, S. Kim, S. Lee, M. Perez-Neut, J. Ding, D. Czyz, R. Hu, Z. Ye, M. He, Y.G. Zheng, H.A. Shuman, L. Dai, B. Ren, R.G. Roeder, L. Becker, Y. Zhao, Metabolic regulation of gene expression by histone lactylation, Nature 574 (2019) 575–580.
[7] J. Wang, P. Yang, T. Yu, M. Gao, D. Liu, J. Zhang, C. Lu, X. Chen, X. Zhang, Y. Liu, Lactylation of PKM2 suppresses inflammatory metabolic adaptation in proinflammatory macrophages, Int. J. Biol. Sci. 18 (2022) 6210–6225.
[8] G.A. Brooks, Lactate as a fulcrum of metabolism, Redox Biol. 35 (2020) 101454.
[9] X. She, Q. Wu, Z. Rao, D. Song, C. Huang, S. Feng, A. Liu, L. Liu, K. Wan, X. Li, C. Yu, C. Qiu, X. Luo, J. Hu, G. Wang, F. Xu, L. Sun, SETDB1 Methylates MCT1 promoting tumor progression by enhancing the lactate shuttle, Adv Sci (Weinh). 10 (2023) e2301871.
[10] L. Pottie, C.S. Adamo, A. Beyens, S. Lütke, P. Tapaneeyaphan, A. De Clercq, P. L. Salmon, R. De Rycke, A. Gezdirici, E.Y. Gulec, N. Khan, J.E. Urquhart, W. G. Newman, K. Metcalfe, S. Efthymiou, R. Maroofian, N. Anwar, S. Maqbool, F. Rahman, I. Altweijri, M. Alsaleh, S.M. Abdullah, M. Al-Owain, M. Hashem, H. Houlden, F.S. Alkuraya, P. Sips, G. Sengle, B. Callewaert, Bi-allelic premature truncating variants in LTBP1 cause cutis laxa syndrome, Am. J. Hum. Genet. 108 (2021) 1095–1114.
[11] R.Y. Pan, L. He, J. Zhang, X. Liu, Y. Liao, J. Gao, Y. Liao, Y. Yan, Q. Li, X. Zhou, J. Cheng, Q. Xing, F. Guan, J. Zhang, L. Sun, Z. Yuan, Positive feedback regulation of microglial glucose metabolism by histone H4 lysine 12 lactylation in Alzheimer’s disease, Cell Metab. 34 (2022) 634–648.e6.
[12] T. Quan, W. Xia, T. He, K. Calderone, G. Bou-Gharios, J.J. Voorhees, A.A. Dlugosz, G.J. Fisher, Matrix Metalloproteinase-1 expression in fibroblasts accelerates dermal aging and promotes papilloma development in mouse skin, J. Invest. Dermatol. 143 (2023) 1700–1707.e1.
[13] X. Wang, W. Fan, N. Li, Y. Ma, M. Yao, G. Wang, S. He, W. Li, J. Tan, Q. Lu, S. Hou, YY1 lactylation in microglia promotes angiogenesis through transcription activation-mediated upregulation of FGF2, Genome Biol. 24 (2023) 87.
[14] S. D’Hondt, B. Guillemyn, D. Syx, S. Symoens, R. De Rycke, L. Vanhoutte, W. Toussaint, B.N. Lambrecht, A. De Paepe, D.R. Keene, Y. Ishikawa, H. P. B¨achinger, S. Janssens, M.J.M. Bertrand, F. Malfait, Type III collagen affects dermal and vascular collagen fibrillogenesis and tissue integrity in a mutant Col3a1 transgenic mouse model, Matrix Biol. 70 (2018) 72–83.
[15] H. Ni, C. Liu, L. Kong, L. Zhai, J. Chen, Q. Liu, Z. Chen, M. Wu, J. Chen, Y. Guo, W. Bai, D. Zhang, K. Xia, G. Huang, S. Pan, B. Liao, K. Ma, L.K. Zhang, J. Cheng, Y. Q. Guan, Preparation of injectable porcine skin-derived collagen and its application in delaying skin aging by promoting the adhesion and chemotaxis of skin fibroblasts, Int. J. Biol. Macromol. 253 (2023) 126718.
[16] T. Panichakul, S. Ponnikorn, W. Tupchiangmai, W. Haritakun, K. Srisanga, Skin anti-aging potential of Ipomoea pes-caprae Ethanolic extracts on promoting cell proliferation and collagen production in human fibroblasts (CCD-986sk cells), Pharmaceuticals (Basel) 15 (2022) 969.
[17] J. Xiong, J. He, J. Zhu, J. Pan, W. Liao, H. Ye, H. Wang, Y. Song, Y. Du, B. Cui, M. Xue, W. Zheng, X. Kong, K. Jiang, K. Ding, L. Lai, Q. Wang, Lactylation-driven METTL3-mediated RNA m(6)a modification promotes immunosuppression of tumor-infiltrating myeloid cells, Mol. Cell 82 (2022) 1660–1677.e10.
[18] Li J, Hou W, Zhao Q, Han W, Cui H, Xiao S, Zhu L, Qu J, Liu X, Cong W, Shen J, Zhao Y, Gao S, Huang G and Kong Q. Lactate regulates major zygotic genome activation by H3K18 lactylation in mammals. Natl. Sci. Rev. 2024;11:nwad295.
[19] A.Y. Park, J.O. Lee, Y. Jang, Y.J. Kim, J.M. Lee, S.Y. Kim, B.J. Kim, K.H. Yoo, Exosomes derived from human dermal fibroblasts protect against UVB-induced skin photoaging, Int. J. Mol. Med. 52 (2023) 120.
[20] M. Li, X. Yang, X. Lu, N. Dai, S. Zhang, Y. Cheng, L. Zhang, Y. Yang, Y. Liu, Z. Yang, D. Wang, D.M. Wilson 3rd., APE1 deficiency promotes cellular senescence and premature aging features, Nucleic Acids Res. 46 (2018) 5664–5677.
[21] U. Ayyangar, A. Karkhanis, H. Tay, A.F.B. Afandi, O. Bhattacharjee, L. Ks, S.H. Lee, J. Chan, S. Raghavan, Metabolic rewiring of macrophages by epidermal-derived lactate promotes sterile inflammation in the murine skin, EMBO J. 43 (2024) 1113–1134.
[22] Y. Lv, Y. Xu, X. Sang, C. Li, Y. Liu, Q. Guo, S. Ramakrishna, C. Wang, P. Hu, H. S. Nanda, PLLA-gelatin composite fiber membranes incorporated with functionalized CeNPs as a sustainable wound dressing substitute promoting skin regeneration and scar remodeling, J. Mater. Chem. B 10 (2022) 1116–1127.
[23] S. Lee, S.W. Baek, D.S. Kim, S.Y. Park, J.H. Kim, J.W. Jung, J.K. Lee, G.M. Park, C. G. Park, D.K. Han, Injectable microparticle-containing hydrogel with controlled release of bioactive molecules for facial rejuvenation, Mater Today Bio. 24 (2024) 100890.
[24] J. Peper, D. Kownatzki-Danger, G. Weninger, F. Seibertz, J.R.D. Pronto, H. Sutanto, D. Pacheu-Grau, R. Hindmarsh, S. Brandenburg, T. Kohl, G. Hasenfuss, M. Gotthardt, E.A. Rog-Zielinska, B. Wollnik, P. Rehling, H. Urlaub, J. Wegener, J. Heijman, N. Voigt, L. Cyganek, C. Lenz, S.E. Lehnart, Caveolin3 stabilizes McT1-
mediated lactate/proton transport in cardiomyocytes, Circ. Res. 128 (2021) e102–e120.
[25] A. Wang, Y. Zou, S. Liu, X. Zhang, T. Li, L. Zhang, R. Wang, Y. Xia, X. Li, Z. Zhang, T. Liu, Z. Ju, R. Wang, J. Loscalzo, Y. Yang, Y. Zhao, Comprehensive multiscale analysis of lactate metabolic dynamics in vitro and in vivo using highly responsive biosensors, Nat. Protoc. 19 (2024) 1311–1347.
[26] G.A. Brooks, The science and translation of lactate shuttle theory, Cell Metab. 27 (2018) 757–785.
[27] Z. Yang, Y. Zheng, Q. Gao, Lysine lactylation in the regulation of tumor biology, Trends Endocrinol. Metab. S1043-2760 (2024) S1043–2760, 00025–0.
[28] H.S. Kaya-Okur, S.J. Wu, C.A. Codomo, E.S. Pledger, T.D. Bryson, J.G. Henikoff, K. Ahmad, S. Henikoff, CUT&tag for efficient epigenomic profiling of small samples and single cells, Nat. Commun. 10 (2019) 1930.
[29] D. Chen, Y. Xi, S. Zhang, L. Weng, Z. Dong, C. Chen, T. Wu, J. Xiao, Curcumin attenuates inflammation of macrophage-derived foam cells treated with poly-Llactic acid degradation via PPARγ signaling pathway, J. Mater. Sci. Mater. Med. 33 (2022) 33.
[30] R. Lin, R. Tao, X. Gao, T. Li, X. Zhou, K.L. Guan, Y. Xiong, Q.Y. Lei, Acetylation stabilizes ATP-citrate lyase to promote lipid biosynthesis and tumor growth, Mol. Cell 51 (2013) 506–518.
[31] B. Xie, M. Zhang, J. Li, J. Cui, P. Zhang, F. Liu, Y. Wu, W. Deng, J. Ma, X. Li, B. Pan, B. Zhang, H. Zhang, A. Luo, Y. Xu, M. Li, Y. Pu, KAT8-catalyzed lactylation promotes eEF1A2-mediated protein synthesis and colorectal carcinogenesis, Proc. Natl. Acad. Sci. U. S. A. 121 (2024) e2314128121.
[32] S. Oh, S.B. Seo, G. Kim, S. Batsukh, K.H. Son, K. Byun, Poly-D,L-Lactic Acid Stimulates Angiogenesis and Collagen Synthesis in Aged Animal Skin, Int. J. Mol. Sci. 24 (2023) 7986. Y. Zou et al.
* 特别声明:
1.本栏目所收录的文献,均为已在国内外医学期刊正式发表的学术论文,其内容系独立的科学研究成果。本公司仅作为学术资料进行转载与分享,并不对文献中的观点、数据或结论进行任何形式的背书或确认。
2.本栏目内容仅供相关人士参考,不构成任何形式的医疗建议、产品推荐或治疗方案指引,所有医美项目均需前往正规机构咨询专业医生量身定制合适方案。
3.文献中涉及的医学材料或技术的功效描述,是基于特定学术观点与发现,并非对任何具体产品的功效、安全性或适应症的承诺、保证或宣传。本栏目中涉及的部分医美项目,基于产品特性,请结合所在司法辖区产品注册适应症甄别借鉴。
4.既往研究成果可能被新的科学证据所更新或替代,敬请动态甄别。
5本栏目仅供中国大陆地区年满18周岁用户浏览。
观察艾维岚®在治疗颈部衰老中的临床疗效,探讨应用艾维岚®改善颈部衰老的安全性。 方法 回顾性分析2021年8月-12月我院门诊部收治的颈部衰老44例患者临床资料,根据是否接受艾维岚®注射分为观察组和对照组,每组22例。观察组采用艾维岚®注射,对照组采用敷颈膜、穴位按摩、涂抹抗衰 老精华液基础抗衰疗法,比较两组皮肤衰老症状评分、临床疗效、不良反应发生情况。
唇部作为面部的一个重要美学单位,在面部特征中发挥着重要影响。基于唇部美学考虑,年轻的唇部状态应是莹润饱满,唇红缘线条流畅、清晰,唇体对称且无皱纹,口角微上翘[1]。而随年龄增长及外部因素的影响,唇部会逐渐呈现老化的表现,如因容量流失所致的唇红变薄、唇红缘模糊、上唇人中延长、口角下垂及口周皱纹增加等[2]。唇部年轻化治疗的目标是实现唇红容量恢复、唇纹填充、口角提升以及口周皮肤年轻化[3]。
The treatment of acne scars has always been challenging. In the past, its gold standard treatment was carbon dioxide (CO2 ) fractional laser, but its efficacy rate was only 51%–70%. The use of poly-L-lactic acid (PLLA) has provided a new treatment s